
Jiwon Jang团队发现ETV4作为机械转换器感知细胞拥挤并调控胚胎干细胞谱系命运
2024年5月,来自韩国浦项科技大学的Jiwon Jang团队在《Nature Cell Biology》发表了题为“ETV4 is a mechanical transducer linking cell crowding dynamics to lineage specification ”的文章。通过体外培养hESCs探究了胚胎发育中的细胞拥挤如何调控细胞的谱系命运。该研究发现原癌基因ETS变种转录因子4(ETS variant transcription factor 4,ETV4)能够作为机械转换器感知细胞拥挤机械信号并调控基因表达和细胞谱系命运。
为了找到在细胞拥挤调控的基因表达中发挥作用的转录因子,研究团队通过在培养皿上包被基质胶限制hESCs的粘附区域,使细胞处于拥挤状态,并对其进行了RNA测序。GO分析显示细胞拥挤导致的差异基因表达集中在胚胎发育和细胞分化通路。随后研究团队使用了新开发的分析工具Lisa (Landscape In Silico Deletion Analysis)对RNA测序数据进行了分析,发现了40个具有显著性差异且在hESCs中高表达的转录调控因子。进一步的蛋白功能注释分析发现7个蛋白结构域的表达水平具有显著性差异,其中有2个与PEA3家族相关。PEA3家族包括3个转录因子:ETV1、ETV4、ETV5。三种转录因子均在hESCs中表达,且细胞拥挤导致三种转录因子水平降低。由于三种转录因子中ETV4表达水平最高,研究团队对其进行了进一步的探究。划痕实验显示划痕周围的细胞中ETV4表达水平增加,提示拥挤导致的ETV4水平降低是可逆的。细胞拉伸实验显示15%的细胞面积减少足以导致显著的ETV4水平降低。此外基质刚度降低也会导致ETV4水平降低。这些结果提示ETV4是一种受到多种机械刺激调控的转录因子。
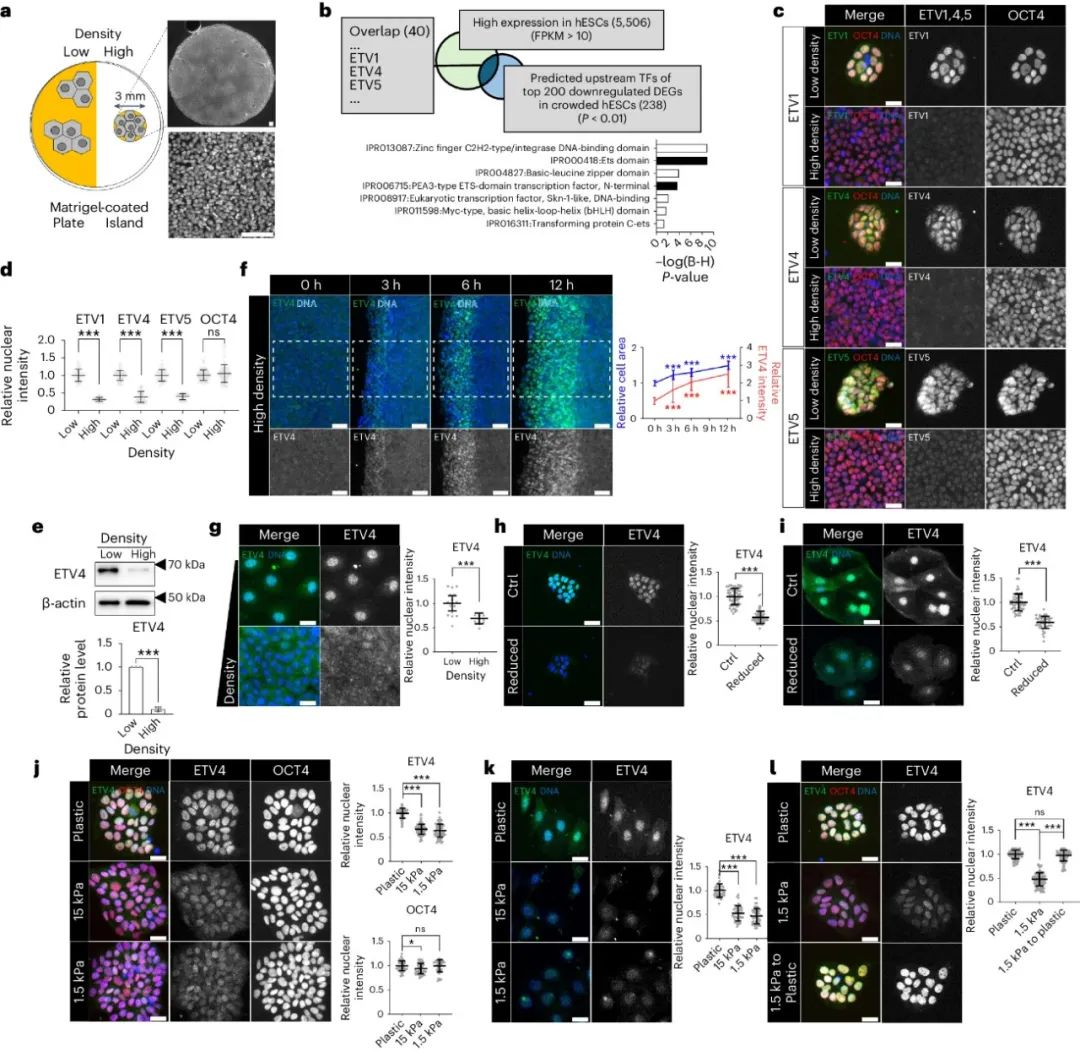
机械微环境调控ETV4水平
体外培养的hESCs能够形成单层上皮样结构,细胞密度会发生时空上的变化。在较小的细胞集落(<0.5mm2)中,细胞拥挤程度较低;而在较大的细胞集落(>2 mm2)中,中心的细胞拥挤程度更高。研究团队进一步探究了ETV4在细胞集落中的表达模式,在较小的细胞集落中,ETV4表达水平较为均一,而在较大的细胞集落中,中心的细胞ETV4表达水平明显低于边缘的细胞,但所有细胞中核心多潜能基因(OCT4、NANOG和SOX2)表达水平均较高。ETV4的表达水平差异在细胞集落直径超过1mm时出现。同样的,细胞密度的增加也会导致ETV4水平的降低。划痕实验也显示,细胞集落扩张导致ETV4表达水平差异是可逆的。此外还发现在较大细胞集落的中心和边缘的细胞中YAP的水平没有显著性差异。研究团队还探究了不同密度的细胞中的ETV4和YAP表达情况,结果显示,随着细胞密度增大,ETV4比YAP更早出现蛋白水平的降低,提示ETV4和YAP对细胞密度的响应有所不同。
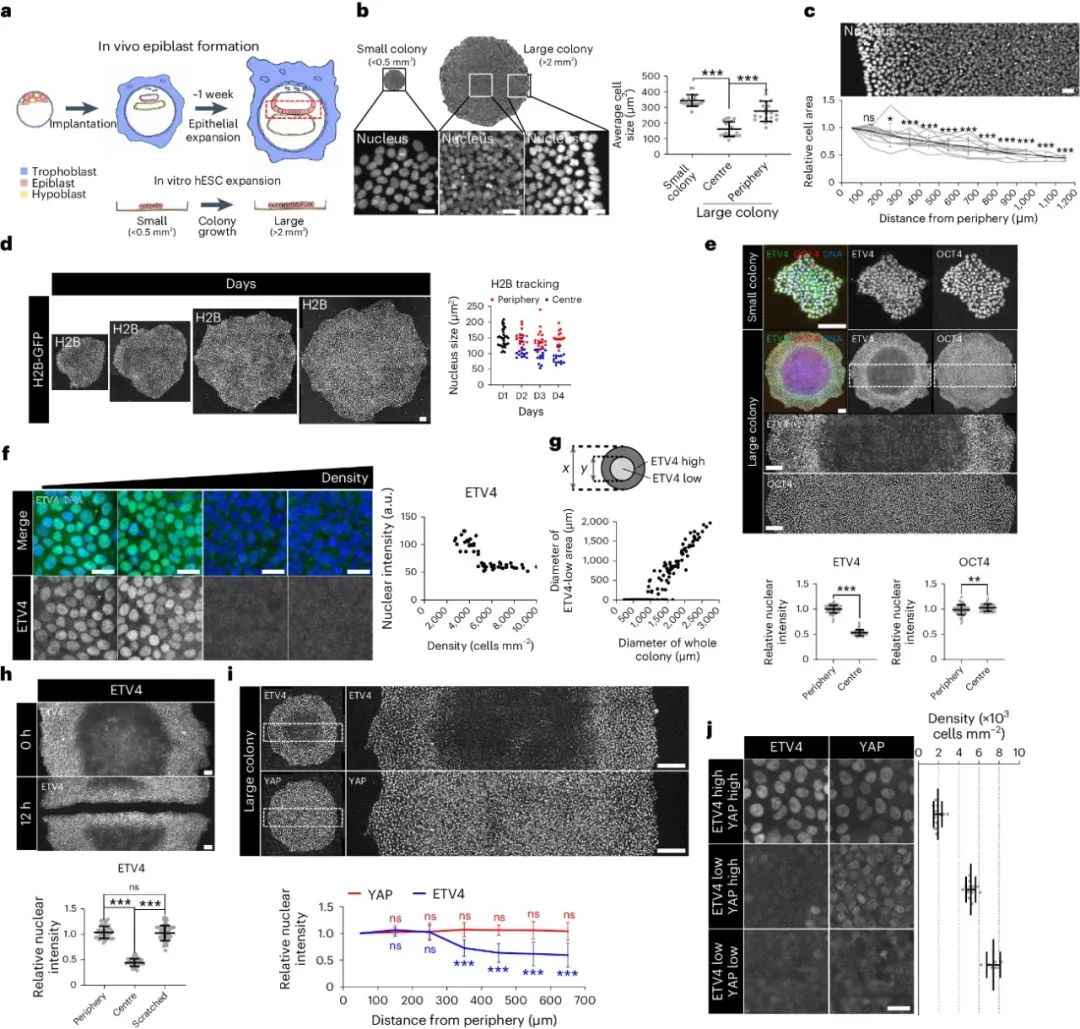
ETV4水平受到细胞拥挤程度的时空调控
体外培养的hESCs集落的分化潜能会发生动态变化。hESCs集落较小时倾向于向中内胚层(mesendoderm, ME)分化,使用神经外胚层(neuroectoderm, NE)诱导分化条件培养也不能诱导产生NE细胞,但使用BMP4和FGF2能够有效将hESCs诱导分化为ME细胞。相反,较大的hESCs集落具有了向ME和NE分化的潜能。在NE诱导分化条件下,NE细胞主要来源于集落中心;而在ME诱导条件下,ME细胞主要来源于集落边缘。由此研究团队推测,在小hESCs集落中被抑制的NE分化潜能在较大的hESCs集落中心区域重新激活。此外未分化的hESCs集落中心ETV4抑制区域的大小与分化的hESCs集落中NE区域大小高度一致。hESCs中过表达ETV4显著抑制了细胞向NE分化,而在小hESCs集落中敲低ETV4能够解除细胞向NE分化的抑制。这些结果都提示细胞拥挤导致的ETV4水平降低重新激活了hESCs的NE分化潜能。研究团队又对敲低ETV4的hESCs进行了RNA测序,发现敲低ETV4导致与细胞外基质重塑相关的蛋白(如MMP)的表达减少。使用MMP的广谱抑制剂能够恢复小hESCs集落的NE分化潜能,而过表达MMP14能逆转ETV4敲除导致的NE分化。这些结果提示ETV4能够感知细胞拥挤并抑制hESCs向NE分化。
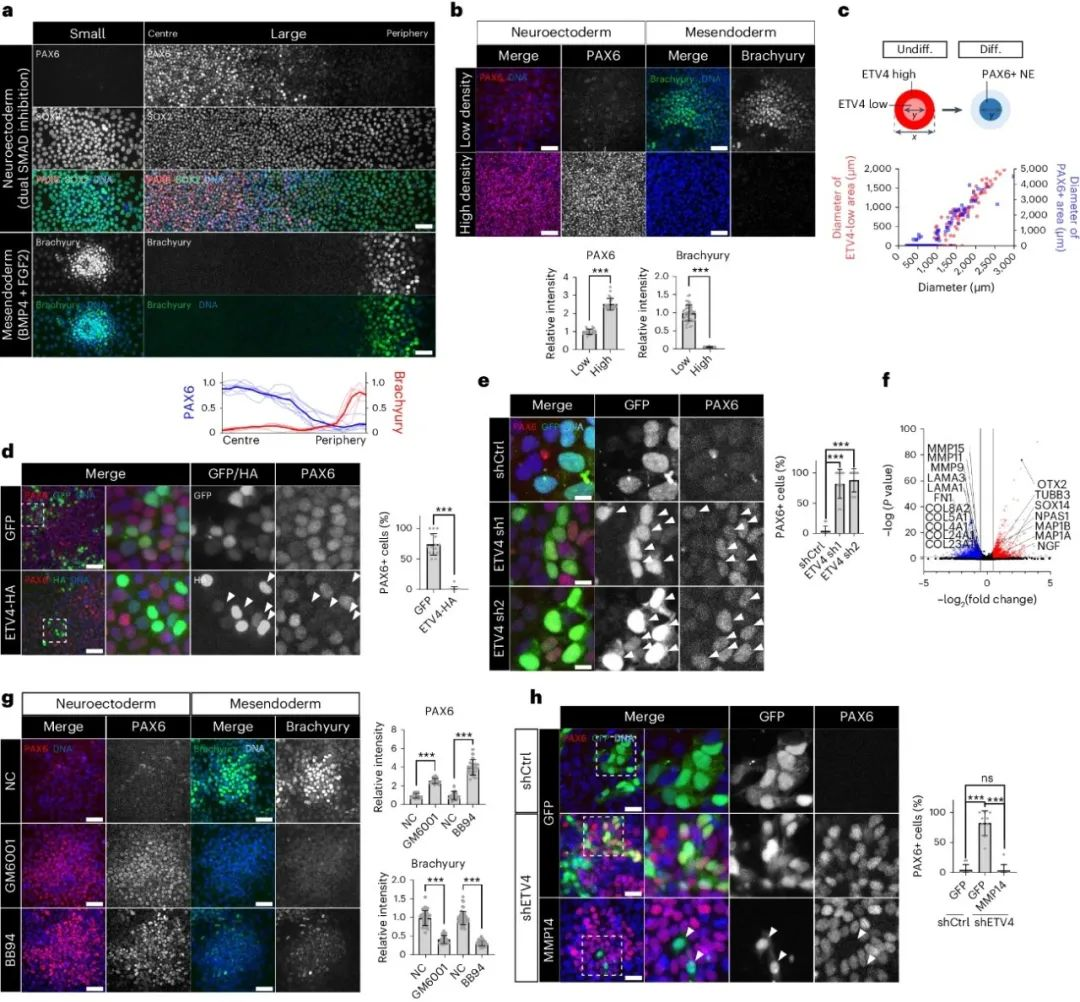
细胞拥挤导致的ETV4失活恢复了hESCs集落的NE分化潜能
为了找到ETV4的上游调控分子,研究团队使用了激酶易位报告系统,当目标激酶激活时,荧光标记底物被磷酸化并定位于细胞质中。研究团队发现在大部分小hESCs集落的细胞中ERK被激活,而在大hESCs集落中心ERK激活程度显著降低,且其分布模式与ETV4表达分布模式一致。ERK抑制剂显著降低了ETV4的蛋白水平但不影响其mRNA水平,而蛋白酶体抑制剂能够逆转这一效应,western blot显示ERK抑制剂显著促进ETV4蛋白降解。进一步的研究显示这一效应是通过E3泛素连接酶COP1介导的。此外ERK抑制剂恢复了小hESCs集落向NE分化潜能,而过表达ETV4逆转了这一效应。相反ERK的持续激活增加了ETV4水平并抑制细胞向NE分化。
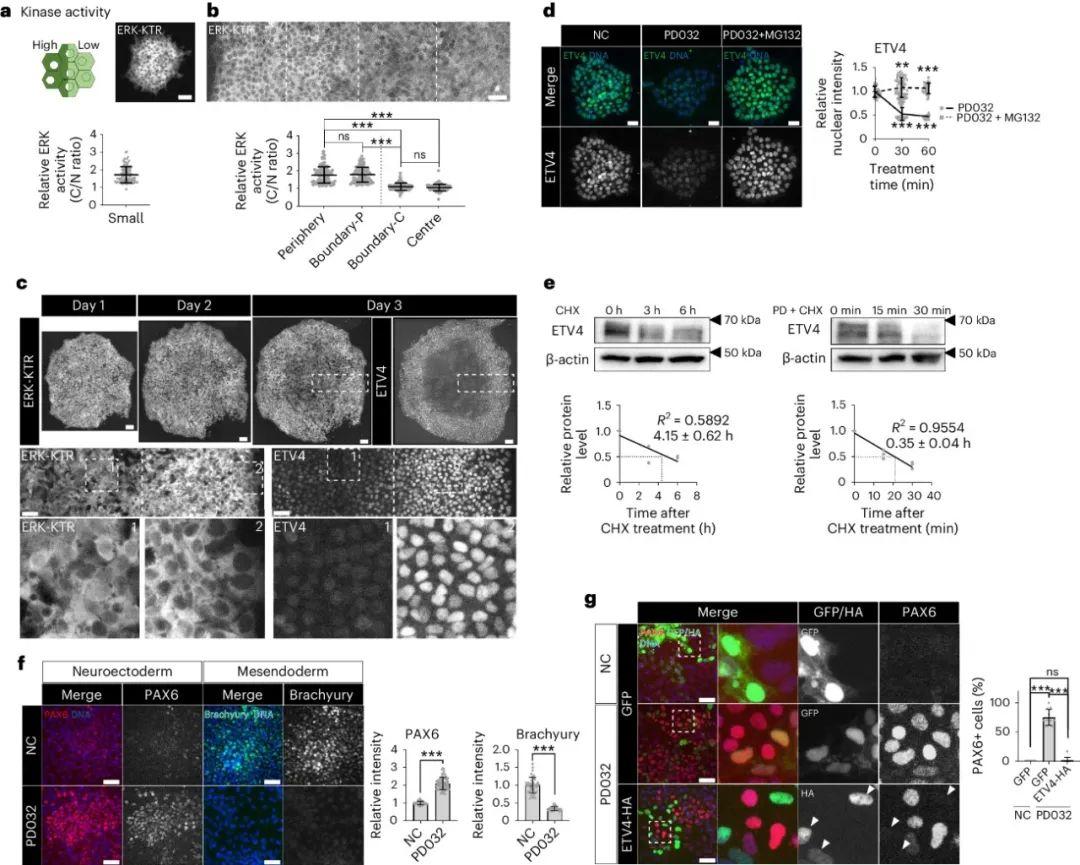
ETV4表达水平受到ERK的时空调控
FGF信号通路在维持细胞多潜能性中发挥关键作用。研究团队发现FGF抑制剂SU-5402或敲低FGFR1抑制了ERK激活并降低了ETV4的蛋白水平。FGFR的内吞在其信号通路激活中发挥重要作用。研究团队构建了多种内体和溶酶体的GFP报告细胞系。结果显示,在小hESCs集落中和较大hESCs集落边缘,含有FGFR1的囊泡与内体和溶酶体存在共定位,提示FGFR1处于活跃的内吞状态。而在较大hESCs集落中心区域,FGFR1主要定位在细胞膜上。高密度培养的细胞中FGFR1的内吞也明显被抑制,提示FGFR1的内吞受到细胞拥挤程度的影响。使用Pitstop2或Dynasore抑制内吞显著抑制了ERK的激活并减少了ETV4的蛋白水平,并恢复小hESCs集落的NE分化潜能。
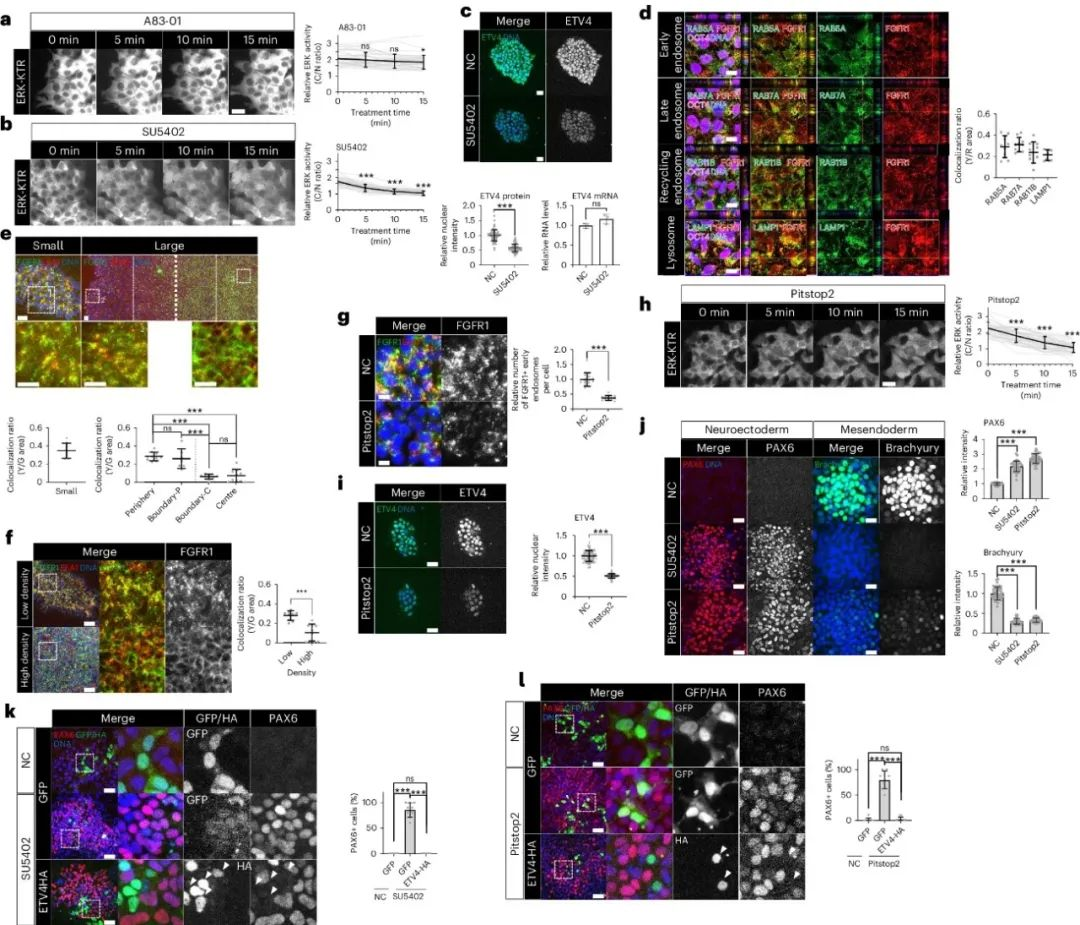
细胞拥挤抑制FGFR1的内吞
为了探究细胞拥挤如何影响FGFR1内吞,研究团队对RNA测序结果进行了进一步的分析,发现拥挤的细胞中与细胞-细胞外基质相互作用相关的基因如整合素基因表达减少。小hESCs集落和较大hESCs集落边缘检测到较高水平的整合素β1,而在较大hESCs集落中心,整合素β1定位于核周而非粘着斑中。此外在拥挤的细胞中粘着斑激酶FAK激活程度显著降低,而抑制FAK的激活能够抑制FGFR1内吞和ERK的激活。考虑到肌动蛋白丝在受体内吞中发挥作用,研究团队进一步探究了整合素与其的关系。免疫荧光染色显示较大hESCs集落中心肌丝束显著减少。抑制肌动球蛋白能够抑制FGFR1内吞和ERK激活,反之亦然。提示整合素-肌动球蛋白介导了细胞拥挤导致的FGFR1内吞。
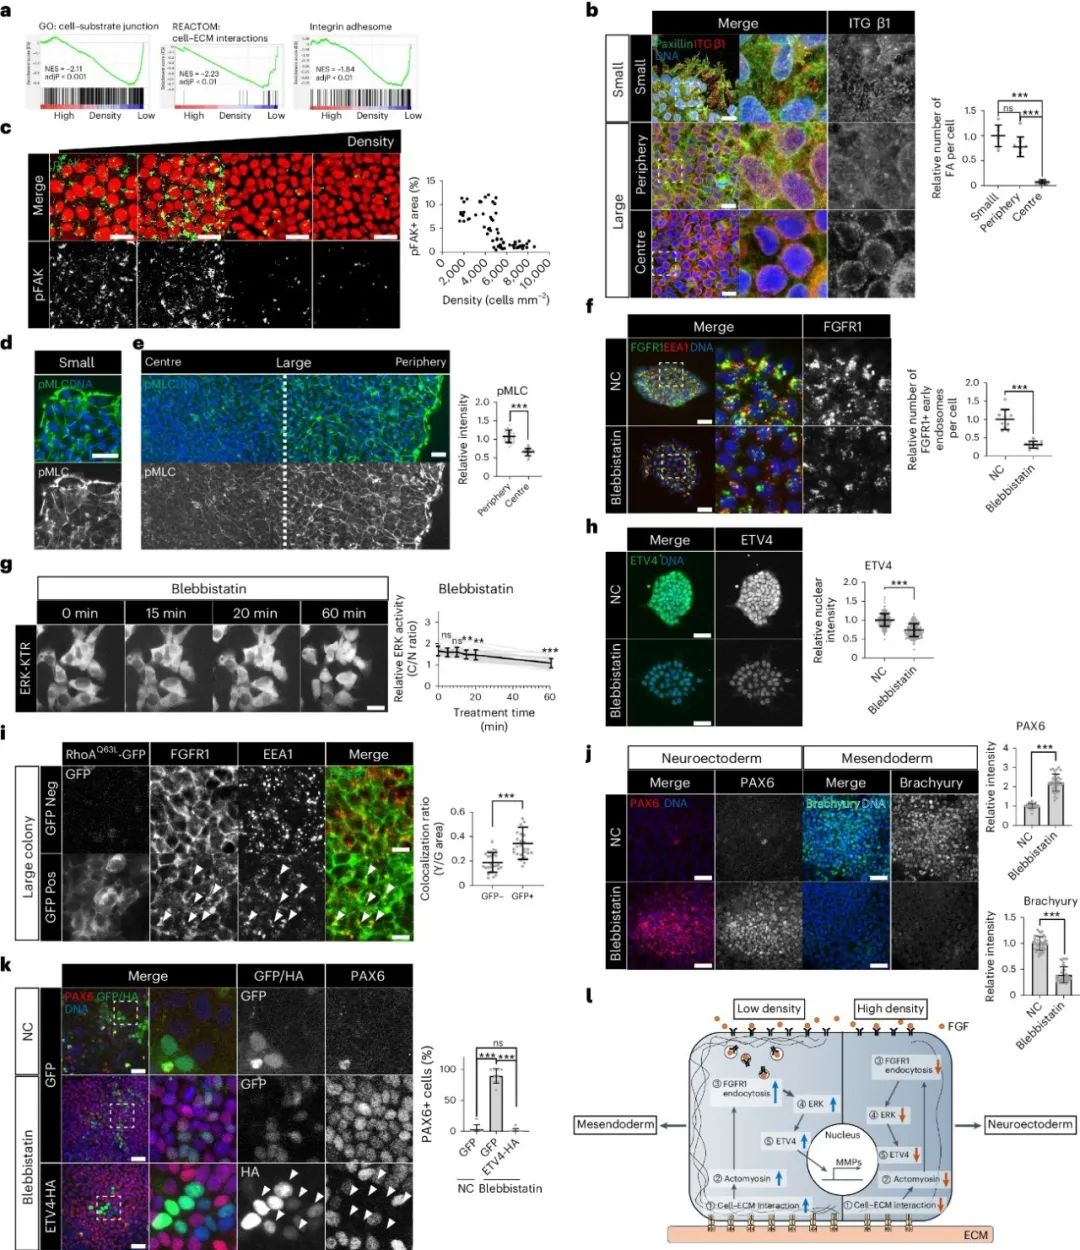
整合素-肌动球蛋白通路调控FGFR1的内吞
最后研究团队根据细胞对细胞外基质的可及性以及整合素-细胞外基质相互作用对hESCs拥挤程度的动态变化进行了数学建模。该模型很好地预测了集落的大小和细胞拥挤程度变化,此外数学模型还预测在集落的不同区域整合素活性会发生显著的转变,且与细胞密度相关,这与实验结果一致。数学模型还显示在hESCs集落直径达到1-1.5mm时,集落中心会出现ETV4低表达区域,这也与实验结果一致。
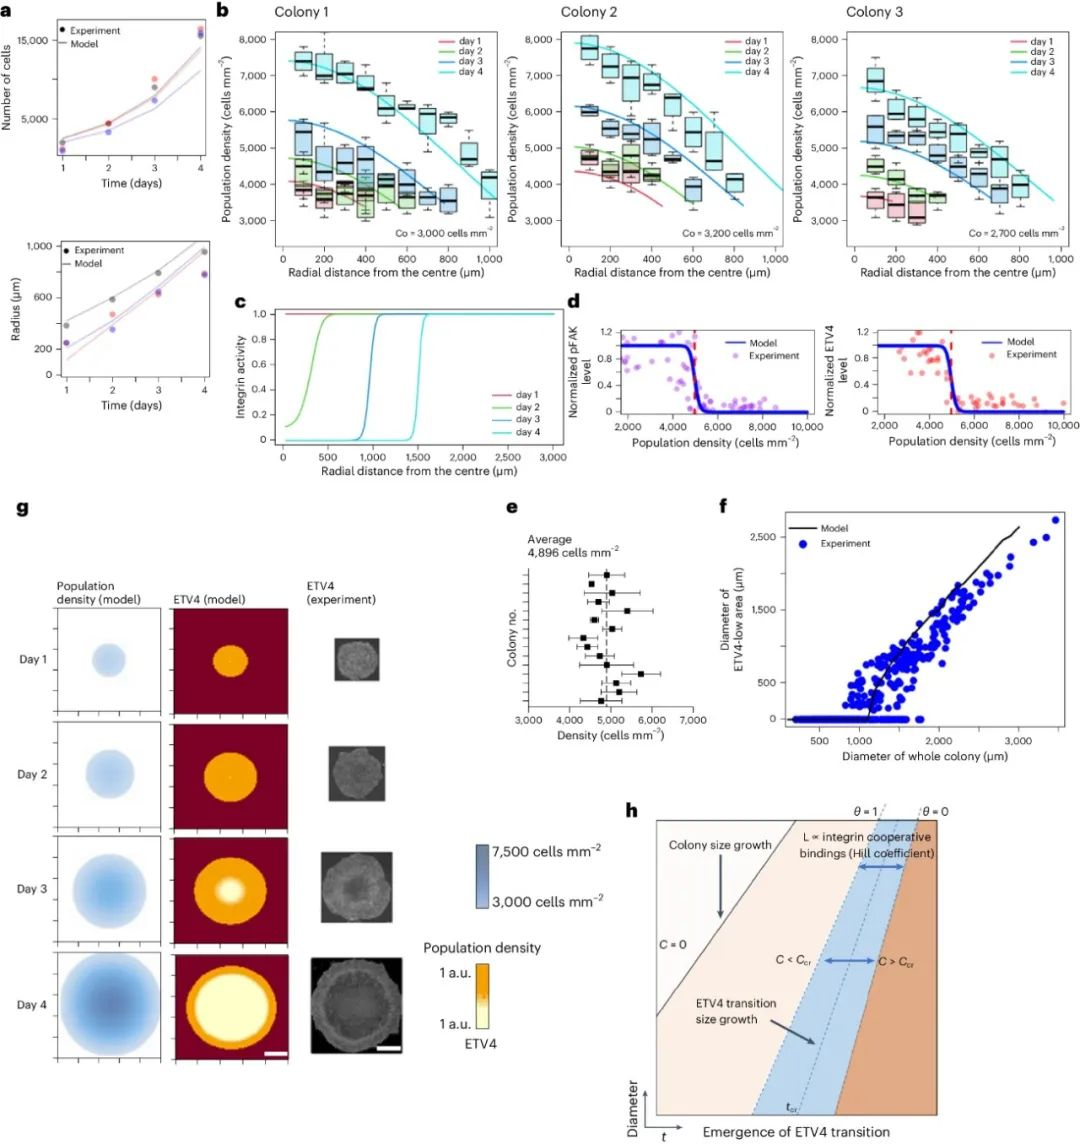
数学建模预测了ETV4对细胞拥挤的敏感性
综上所述,该研究揭示了在hESCs扩增过程中,活跃的增殖促使集落中心细胞拥挤。由于整合素-ECM相互作用,细胞拥挤的逐渐变化导致整合素-肌动球蛋白通路的失活,抑制了 FGFR1的内吞,进而降低了转录因子 ETV4 的蛋白水平并恢复其神经NE分化潜能。该研究不仅发现了新的机械传导因子ETV4,还提供了新的将力学微环境和谱系命运联系起来的机制。

据悉,在脊椎动物胚胎发育早期,胚胎会经历一个进化上保守的过程,形成单层上皮层,称为上胚层。随后上胚层会发生10-20倍的扩张并获得成熟分化潜能[1, 2]。然而该过程中面积的扩张对细胞谱系命运的影响仍不清楚。此外在基于微图案的人胚胎干细胞(human embryonic stem cells,hESCs)来源的原肠胚模型中,分化的hESCs自发形成有序的胚层结构[3]。考虑到上胚层的结构在进化上是保守的,作者猜想存在一些形态学因素参与调控细胞谱系命运。
单层上皮在有限空间中的增殖会导致细胞拥挤,进而导致增殖抑制和细胞的外排[4]。研究表明细胞拥挤在表皮和斑马鱼心脏的细胞分化中发挥重要作用[5, 6]。然而在胚胎发育过程中细胞如何将复杂的机械刺激转换成基因的表达模式仍不清楚。
参考文献:
[1].Sheng G. Epiblast morphogenesis before gastrulation. Dev Biol. 2015 May 1;401(1):17-24.
[2].Nakamura T. et, al. A developmental coordinate of pluripotency among mice, monkeys and humans. Nature. 2016 Sep 1;537(7618):57-62.
[3].Etoc F. et, al. A Balance between Secreted Inhibitors and Edge Sensing Controls Gastruloid Self-Organization. Dev Cell. 2016 Nov 7;39(3):302-315.
[4].Eisenhoffer GT, Rosenblatt J. Bringing balance by force: live cell extrusion controls epithelial cell numbers. Trends Cell Biol. 2013 Apr;23(4):185-92.
[5].Miroshnikova YA. et, al. Adhesion forces and cortical tension couple cell proliferation and differentiation to drive epidermal stratification. Nat Cell Biol. 2018 Jan;20(1):69-80.
[6].Priya R. et, al. Tension heterogeneity directs form and fate to pattern the myocardial wall. Nature. 2020 Dec;588(7836):130-134.
来源:MechanoBio微信公众平台
本文仅作为科普介绍,内容来源于网络,如有侵权,请联系我们删除


